


Resumen:
El género Bacillus agrupa especies de amplia distribución en suelos y rizósferas, empleadas en biocontrol mediante antibiosis, competencia ecológica y activación de resistencia sistémica inducida. Estas funciones dependen de lipopéptidos, enzimas hidrolíticas y elicitores cuya expresión varía entre especies y entre cepas.
Este artículo perfila a Bacillus amyloliquefaciens QST 713, ingrediente activo de Serenade®. La cepa combina una acción de contacto —lipopéptidos que desestabilizan la membrana del patógeno— con la activación de las defensas de la planta, y presenta una particularidad relevante para la floricultura: su modo de acción multisitio contribuye al manejo de la resistencia a fungicidas químicos frente a Botrytis cinerea.
Introducción:
Los Bacillus son bacterias Gram positivas formadoras de endosporas, ubicuas en suelos y ambientes vegetales, donde colonizan la rizósfera y la filósfera, secretan metabolitos con actividad antimicrobiana y modulan las respuestas defensivas de la planta (Kloepper et al., 2004; Fira et al., 2018). En sanidad vegetal se emplean como complemento de los fungicidas químicos, integrados en estrategias de manejo que reducen la presión selectiva sobre los patógenos.
Pero la expresión funcional de esos rasgos no es uniforme dentro del género, y ahí empieza el problema práctico. Asumir que “todos los Bacillus son iguales” lleva a decisiones de manejo equivocadas: dos productos basados en el mismo género pueden hablar idiomas bioquímicos distintos —uno le habla a la pared celular del hongo, otro a su membrana— y por tanto ocupar posiciones diferentes en un programa fitosanitario.
Este es el segundo artículo de una serie que recorre esa diversidad. El primero perfiló a Bacillus pumilus QST 2808 (Sonata®) y su acción sobre la pared fúngica vía aminoazúcares; aquí perfilamos a B. amyloliquefaciens QST 713 (Serenade®) y su acción sobre la membrana vía lipopéptidos.
Un género con tres herramientas
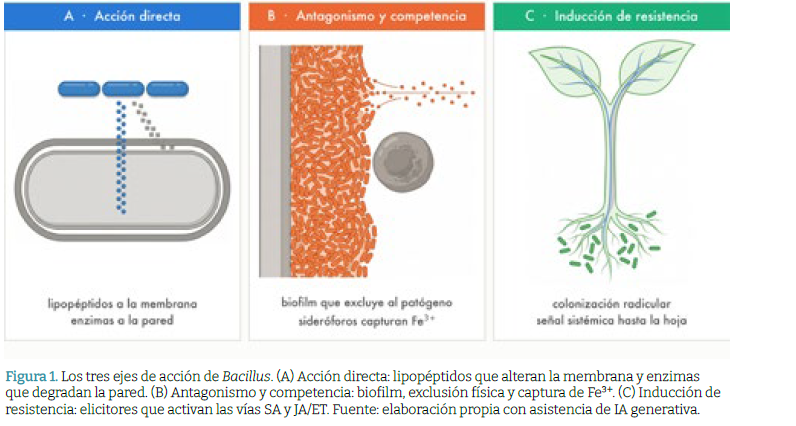
La acción de los Bacillus sobre las plantas se organiza en tres ejes ampliamente aceptados (Figura 1). La acción directa involucra metabolitos antimicrobianos y enzimas que interfieren con la viabilidad del inóculo: los lipopéptidos alteran la permeabilidad de las membranas fúngicas, mientras las enzimas hidrolíticas degradan componentes de la 43
pared celular. El antagonismo y la competencia ecológica operan por disputa de sustratos limitantes, formación de biofilms que restringen el acceso espacial y producción de sideróforos con alta afinidad por Fe³+.
El tercer eje es la activación de defensas en la planta, mediada por elicitores bacterianos que disparan las rutas del ácido salicílico y del jasmonato/etileno, con expresión de genes de defensa y mayor resistencia en tejidos distales (Kloepper et al., 2004). Su contribución relativa depende de la especie, la cepa, la formulación, la dosis y las condiciones ambientales. Eso explica por qué dos productos del mismo género rinden distinto en campo.
Qué distingue a Bacillus amyloliquefaciens
Del género pasamos a la especie. No todos los Bacillus producen el mismo perfil de lipopéptidos ni colonizan con la misma eficiencia. Frente a B. pumilus —de estrategia antibiótica más focalizada—, B. amyloliquefaciens se caracteriza por un repertorio lipopeptídico amplio, con producción robusta de las tres grandes familias: surfactinas, iturinas y fengicinas (Ongena & Jacques, 2008). Forma además biofilms intensos y coloniza con eficiencia tanto raíces como superficies foliares, lo que sostiene concentraciones activas de metabolitos en la interfase con el patógeno.
Un detalle que la propia serie ilustra bien: QST 713 se registró originalmente como Bacillus subtilis y hoy se adscribe a B. amyloliquefaciens tras la revisión genómica del grupo (University of Hertfordshire, 2024). El nombre cambió; la biología, no. Lo que define el comportamiento en campo es el perfil de la cepa, no la etiqueta de la especie.
El idioma de QST 713: lipopéptidos que desarman la membrana
QST 713 es un aislado natural producido por fermentación y formulado como suspensión concentrada, con registro ICA vigente en Colombia, reingreso corto y carencia de cero días —aplicable hasta cosecha—. La cepa libera lipopéptidos de las familias iturina, surfactina y fengicina, que comprometen la integridad de la membrana celular del patógeno (Samaras et al., 2021; Ongena & Jacques, 2008).
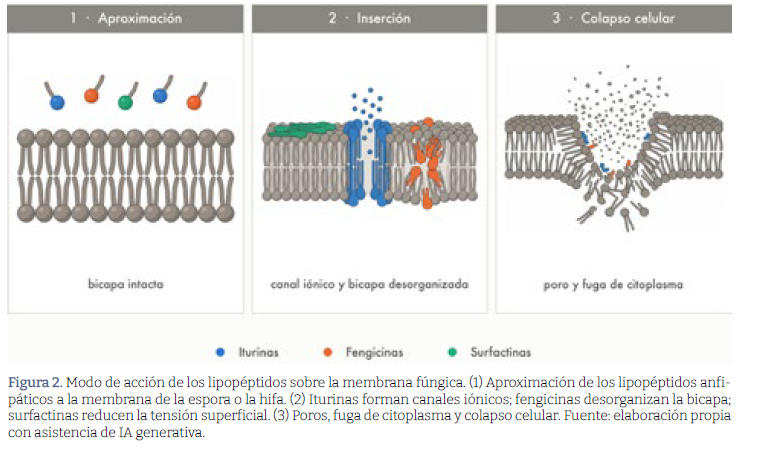
Conviene una analogía que contrasta con la del artículo anterior. Si el aminoazúcar de Sonata® es una llave falsa que traba la cerradura enzimática y detiene la construcción de la pared celular, los lipopéptidos de Serenade® son un disolvente que perfora el muro mismo. No bloquean una enzima: desestructuran la membrana. Son moléculas anfipáticas —cola grasa y cabeza afín al agua, como un detergente—, y esa doble naturaleza les permite insertarse en la bicapa lipídica de la membrana fúngica y desorganizarla. Cada familia aporta un matiz del mismo ataque (Figura 2):
- Las iturinas se insertan en la membrana y forman canales iónicos: la célula pierde potasio y otros solutos, y “se desangra” osmóticamente.
- Las fengicinas desorganizan la bicapa en profundidad, distorsionan la hifa y comprometen los orgánulos internos.
- Las surfactinas reducen la tensión superficial, facilitan el biofilm bacteriano sobre la hoja y abren el paso a las otras dos familias
La particularidad de la cepa: manejar la resistencia, no solo controlar la enfermedad:
Hay un rasgo que convierte a QST 713 en herramienta estratégica y no en un fungicida más. El control de Botrytis cinerea descansa en gran medida sobre fungicidas de sitio único, entre ellos los SDHI (inhibidores de la succinato deshidrogenasa). Botrytis es un patógeno de alto riesgo de resistencia: alta variabilidad genética, esporulación abundante, ciclos cortos y muchas aplicaciones por campaña. La resistencia a SDHI se asocia a mutaciones puntuales en el gen sdhB —H272R/Y, N230I y P225F/H/L, entre otras— que reducen diferencialmente la sensibilidad del hongo (Samaras et al., 2021).
No es una amenaza abstracta para la sabana de Bogotá. En un estudio propio sobre 60 aislados de B. cinerea procedentes de seis fincas productoras de rosa (variedad ‘Vendela’), tipificados por secuenciación de los genes ERG27 y sdhB, se documentó una notable diversidad genética de resistencia conviviendo dentro de una misma unidad productiva: de tres a cinco genotipos distintos por finca (Torres & López Jara, 2025).
Para fluopyram, los genotipos se distribuyeron así: silvestre sensible, 53,3 %; H272R de baja resistencia, 18,3 %; P225F y N230I de resistencia moderada, 26,6 %; y P225L de alta resistencia, 1,8 %. El dato relevante: en las fincas que integraron Serenade® dentro de su manejo se observaron menores frecuencias de mutaciones de resistencia moderada y alta.
Ese efecto tiene respaldo experimental controlado. En ensayos de competencia y en invernadero, la aplicación de QST 713 —sola o en alternancia con fluopyram— desfavoreció la selección de los mutantes sdhB: las cepas sensibles conservaron su dominancia, y los esquemas de alternancia ofrecieron alta eficacia de control y una reducción de la frecuencia de resistencia a SDHI (Samaras et al., 2021). La lógica es doble.
Primero, un blanco que no se puede “aprender”. Un fungicida de sitio único apaga una enzima: una sola mutación en ese sitio activo basta para escapar. El ataque multisitio no se dirige a ningún sitio activo sino a una estructura física, y una mutación
que evada a una familia sigue expuesta a las otras. No hay un gen único que confiera resistencia, y por eso no se ha documentado resistencia de campo a este modo de acción, clasificado en el grupo BM 02 (Fungicide Resistance Action Committee [FRAC], 2025).
Segundo, el biológico protege al químico. Al reducir la población fúngica viable entre aplicaciones químicas, QST 713 disminuye el reservorio reproductivo del que podrían surgir y multiplicarse los mutantes resistentes. En términos prácticos, el biológico no compite con el químico: alarga su vida útil.
En un programa de rosa, esto ubica a Serenade® no como sustituto sino como el componente que preserva la vigencia del esquema completo: alternado o en mezcla dentro del manejo integrado, controla Botrytis con carencia cero y, a la vez, frena la erosión de sensibilidad que amenaza a las moléculas de síntesis.
Conclusiones:
La variabilidad en producción de metabolitos, colonización y activación de defensas es propia de cada cepa, no del género. En esta serie el contraste es explícito: B. pumilus QST 2808 le habla a la pared del hongo mediante aminoazúcares; B. amyloliquefaciens QST 713 le habla a la membrana mediante un repertorio amplio de lipopéptidos. Son idiomas distintos, y precisamente por eso resultan complementarios: dos modos de acción sobre estructuras celulares diferentes, sin resistencia cruzada, integrables en rotación.
La particularidad de QST 713 que más interesa a la floricultura de exportación va más allá del control inmediato. Su naturaleza multisitio, respaldada por evidencia experimental y por datos de campo en la sabana de Bogotá, lo convierte en una herramienta de manejo de la resistencia. Donde las poblaciones locales ya acumulan mutaciones frente a los SDHI y conviven varios genotipos por finca, una herramienta que controla y desacelera la evolución de la resistencia constituye un componente necesario del programa.
Conocer qué dice cada cepa —a qué estructura del patógeno le habla y qué le enseña a la planta— permite ubicarla en el programa y convertir un producto biológico en una decisión agronómica precisa.
Referencias:
Fira, D., Dimkić, I., Berić, T., Lozo, J., & Stanković, S. (2018). Biological control of plant pathogens by Bacillus species. Journal of Biotechnology, 285, 44–55. https://doi.org/10.1016/j. jbiotec.2018.07.044
Fungicide Resistance Action Committee. (2025). FRAC code list 2025: Fungicides sorted by mode of action. https://www.frac.info/media/ljsi3qrv/ frac-code-list-2025.pdf
Kloepper, J. W., Ryu, C.-M., & Zhang, S. (2004). Induced systemic resistance and promotion of plant growth by Bacillus spp. Phytopathology, 94(11), 1259–1266. https://doi.org/10.1094/ PHYTO.2004.94.11.1259
Le Clerc, V., Moussa, S. A., Suel, A., Koutouan, C. E., El Ghaziri, A., Gaucher, M., Brisset, M.-N., Briard, M., & Geoffriau, E. (2025). Identification of plant resistance inducers and evaluation of genotype receptivity for carrot protection against Alternaria leaf blight. Frontiers in Plant Science, 16, 1513301. https://doi.org/10.3389/ fpls.2025.1513301
Ongena, M., & Jacques, P. (2008). Bacillus lipopeptides: Versatile weapons for plant disease biocontrol. Trends in Microbiology, 16(3), 115–125. https://doi.org/10.1016/j.tim.2007.12.009
Samaras, A., Hadjipetrou, C., & Karaoglanidis, G. (2021). Bacillus amyloliquefaciens strain QST713 may contribute to the management of SDHI resistance in Botrytis cinerea. Pest Management Science, 77(3), 1316–1327. https://doi. org/10.1002/ps.6145
Torres, D. M., & López Jara, M. (2025). Evaluación de sensibilidad de Botrytis cinerea a fenhexamid y fluopyram en rosa de la sabana de Bogotá: Integración de datos genéticos y fenotípicos [Datos no publicados]. Bayer S.A. – Diagnofruit Colombia.
University of Hertfordshire. (2024). Bacillus amyloliquefaciens strain QST 713. Bio-Pesticides DataBase (BPDB). Recuperado el 5 de agosto de 2026, de http://sitem.herts.ac.uk/aeru/bpdb/ Reports/1949.htm
Elaborado por: Diego Torres /KAM Flores, Bayer

